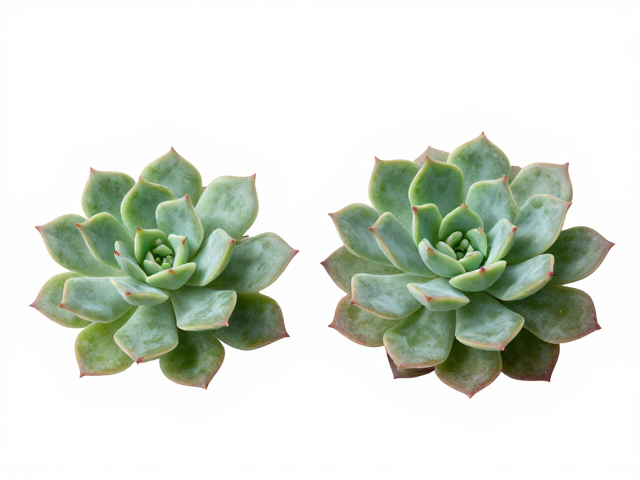
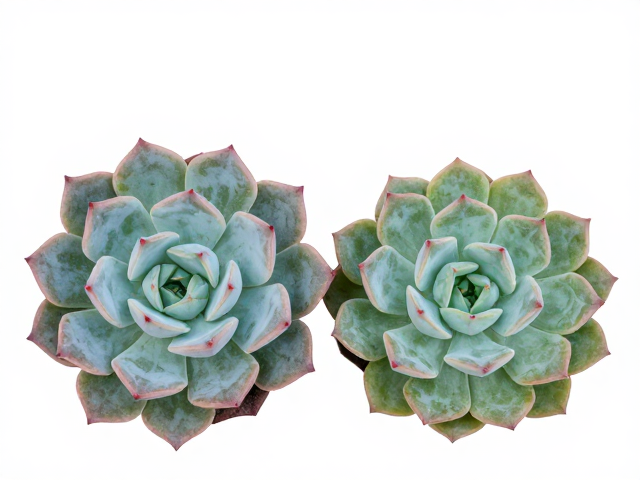
群生多肉杂交后代与亲本叶形对比,一眼区分外观差异
叶缘锯齿与波曲度的直观辨识
在多肉植物杂交育种的实际观察中,亲本与杂交后代在叶形上的差异往往最先体现在叶缘的微观结构上。以常见的景天科拟石莲花属为例,部分原始亲本如“姬胧月”或“桃之卵”,其叶片边缘通常保持着相对平滑或带有极细微锯齿的特征,且整体轮廓较为规整。相比之下,经过人工定向杂交产生的后代,如某些经过多年选育的缀化或变异株系,叶缘可能会出现不规则的波浪状起伏,或者锯齿变得更加尖锐且密集。这种差异并非随机分布,而是严格遵循孟德尔遗传定律中关于形态特征的显性与隐性表达规律。
通过高倍放大镜观察叶片基部的连接处,可以发现亲本与杂交后代在叶尖形态上的显著分野。许多原生种多肉植物的叶尖呈现为标准的圆锥形或微凹,过渡自然且线条流畅。而杂交后代中,若引入了如“玉蝶”或“特玉莲”等叶片宽大、叶尖钝圆的亲本基因,其后代的叶尖往往会变得短钝,甚至出现叶片基部变窄、中部隆起的“舟状”特征。这种形态上的改变使得叶片在排列时更容易形成紧凑的莲座状,与亲本较为松散或扁平的排列方式形成鲜明对比,无需借助专业仪器,仅凭肉眼观察叶尖与叶缘的几何关系即可初步判断其遗传背景。
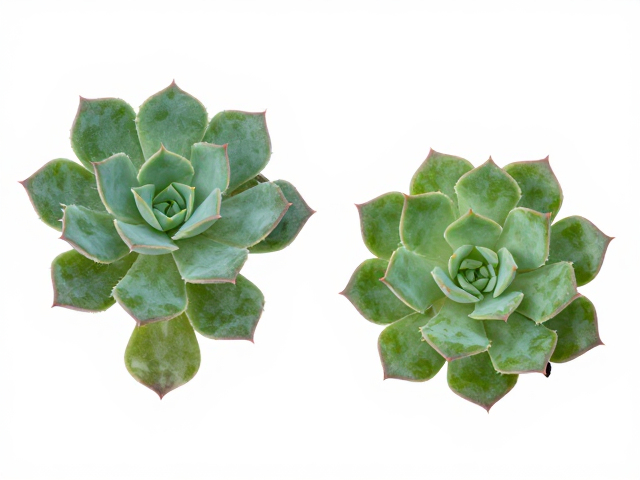
叶片厚度与表皮质感的从属关系
叶片厚度的变化是区分杂交后代与亲本的另一大关键视觉指标,这直接反映了植物体内水分储存组织(薄壁细胞)的发育差异。许多原始亲本品种为了适应原生地的干旱环境,进化出了厚实的肉质叶片,触感坚硬,按压时有明显的回弹感。而在杂交过程中,若引入了叶片较薄、生长速度快的品种作为父本或母本,杂交后代往往会在表型上表现出叶片变薄、质地变软的趋势。这种变薄并非病理性的萎蔫,而是遗传了快速生长的特性,使得叶片在相同光照条件下,其单位面积内的细胞数量可能少于亲本,从而在视觉上呈现出更轻盈、通透的质感。
除了厚度,叶片表面的蜡质层(白粉)分布与反光特性也是重要的辨识细节。部分亲本品种,如“雪晃”或某些特定玉蝶品种,叶片表面覆盖着厚实且均匀的粉末状白粉,呈现出哑光的雾面效果。当这类特征与无白粉或白粉易脱落的亲本杂交后,后代叶片的表皮质感会出现显著的折中或突变。有的杂交后代完全继承了亲本的厚粉特征,而有的则表现为叶片表面光滑如镜,反射光线强烈。观察时需注意,这种质感差异在不同光照角度下尤为明显,哑光表面吸收光线显得沉稳,而光滑表面反射光线显得明亮,这种光学性质的差异为区分杂交后代与亲本提供了直观的视觉线索。
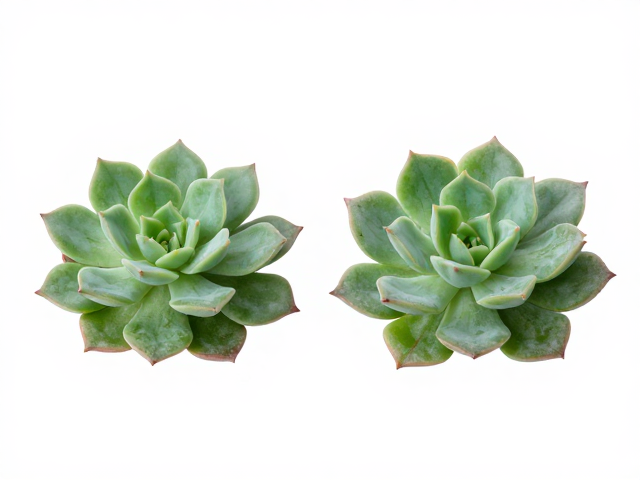
叶色渐变与色素沉积的遗传表现
叶色的表现是多肉植物杂交后代最易被察觉的差异之一,这涉及到花青素、类胡萝卜素等色素在叶片不同区域的沉积模式。亲本品种通常具有稳定的基础色调,例如某些品种常年保持稳定的蓝绿色或深紫色,色素分布均匀。然而,杂交后代由于基因重组,色素合成途径可能受到新的调控,导致叶色出现更复杂的渐变效果。例如,在光照充足的环境下,某些杂交后代的叶尖或叶缘会出现比亲本更深、更鲜艳的颜色斑块,这是因为杂交可能激活了更强的花青素合成基因,使得植物在应对环境压力时能产生更多的保护性色素。
除了颜色深浅,叶色的稳定性也是区分的重要依据。部分亲本品种在环境变化时颜色波动较大,容易出现返祖或褪色现象。而经过多代筛选的杂交后代,往往在色彩稳定性上有所提升,或者表现出独特的“状态色”。例如,某些杂交组合产生的后代,其叶片中心可能呈现为淡雅的粉色,而边缘迅速过渡为深红色,这种清晰的色阶过渡在亲本中可能表现为模糊的晕染或完全缺失。观察时,应对比同一养护环境下,亲本与后代在昼夜温差下的显色反应,杂交后代通常对温度变化更为敏感,能在短时间内展现出比亲本更丰富的色彩层次,这种生理反应的差异直接映射在外观的色彩表现上。
株型架构与生长习性的宏观差异
从宏观视角观察,株型架构是区分亲本与杂交后代的最终形态体现。许多原始亲本品种具有明确的生长习性,如单头生长、易群生或匍匐生长,株型相对固定。杂交育种中,为了追求更紧凑或更壮观的株型,常引入具有强分枝性或矮化特性的亲本。杂交后代因此可能在株高、冠幅比例上与亲本产生显著偏差。例如,某些杂交后代可能完全继承了亲本的矮化基因,使得植株在达到相同叶龄时,其株高仅为亲本的三分之二,叶片排列更为紧密,整体呈现出一种精致紧凑的球状或半球状外观,而亲本则可能保持修长或摊开的姿态。
此外,叶片的排列方式(叶序)也是株型差异的重要组成部分。亲本多肉的叶片通常按照严格的螺旋状或莲座状排列,间距均匀。杂交后代中,若引入了叶片排列紧密的品种,其后代的叶片可能会出现重叠现象,形成类似“玫瑰花苞”般的紧凑结构,叶片间缝隙极小。相反,若引入叶片稀疏的品种,杂交后代可能出现叶片间距变大、株型松散的情况。这种排列方式的改变直接影响植株的光线接收效率和整体视觉美感,通过观察叶片之间的重叠程度和整体轮廓的紧凑性,可以直观地判断出土培时间相近的植株中,哪一株更可能携带紧凑型生长的杂交基因,从而在外观上实现快速区分。